Immagina di essere in fila davanti alla tua pasticceria preferita, con il profumo di zucchero a velo e crema che ti avvolge, indeciso tra una ciambella glassata e una crostata alla frutta. Le osservi in vetrina, le metti a confronto, la ciambella conquista il tuo favore e decidi di puntare su di lei. Poi, proprio quando arrivi davanti al bancone, scopri che sono rimaste soltanto le crostate. Così, senza troppi giri di parole, ordini una crostata.
A prima vista, questi due momenti sembrano appartenere a due mondi opposti. Nel primo caso hai soppesato le alternative partendo dai tuoi gusti personali, dai tuoi desideri e dalla voglia del momento. Nel secondo caso ti sei limitato a prendere atto che esisteva una sola opzione disponibile, adattandoti alla situazione. Eppure, una ricerca pubblicata sulla rivista Imaging Neuroscience dimostra che, sotto il cofano, il nostro cervello gestisce entrambi i passaggi seguendo dinamiche molto più simili di quanto immaginiamo.
Per chi ha quindici anni, o per chi non ha mai letto un articolo di neuroscienze, questa idea può sembrare quasi spiazzante. Siamo abituati a pensare che scegliere liberamente sia un atto speciale, quasi magico, diverso dal seguire una regola o un vincolo. Invece, osservando l’attività elettrica del cervello millisecondo dopo millisecondo, emerge un quadro affascinante in cui scelte libere e decisioni forzate condividono lo stesso meccanismo di accumulo delle prove.
Libera scelta e vincolo nella vita di tutti i giorni
Che cosa intendiamo davvero quando parliamo di libera scelta? Nella vita quotidiana significa accorgerci che esistono più strade possibili, metterle sulla bilancia e sceglierne una guidati da fattori interni, come le nostre preferenze, i nostri valori, i nostri obiettivi o anche solo la voglia improvvisa di qualcosa di dolce. Può trattarsi di un gesto banale, come decidere quale tazza usare per la colazione, oppure di una decisione più impegnativa, come scegliere quale sport praticare, quale materia approfondire o se dire la verità in una situazione delicata.
Le decisioni forzate, al contrario, nascono quando la scelta è già tracciata da una condizione esterna o da una regola precisa. Non devi decidere tra due o più piatti nel menu, devi riconoscere l’unica opzione presente e portarla a termine. Anche in pasticceria, se sul vassoio c’è solo la crostata, il tuo compito è riconoscerla e decidere di prenderla, senza doverla mettere in competizione con una ciambella ormai finita.
Per molto tempo, gli studiosi hanno pensato che il cervello attivasse circuiti completamente differenti per questi due tipi di azioni, proprio perché la libera scelta ci dà la sensazione di esprimere la nostra identità. Alcuni studi con tecniche di neuroimaging hanno effettivamente mostrato schemi di attività distribuiti in aree diverse a seconda del contesto. Tuttavia, sapere quali zone si accendono non basta per capire come una scelta prenda forma nel tempo e se il percorso che porta alla decisione sia davvero diverso tra una scelta libera e una forzata.
-
Scelta libera: prevede la presenza di più alternative, il confronto tra esse e una spinta legata a preferenze, obiettivi o strategie personali.
-
Decisione forzata: parte da un’unica opzione indicata o disponibile, richiede di riconoscerla e di impegnarsi nell’azione corrispondente.
-
Differenza percepita: la scelta libera sembra più personale e identitaria, mentre quella forzata appare più automatica e guidata dall’esterno.
Come il cervello raccoglie prove prima di decidere
Per capire come nasce una decisione, i neuroscienziati usano spesso l’immagine di un giudice in tribunale. Il giudice ascolta i testimoni, esamina i fatti, pesa gli elementi a favore e contro e, solo quando ritiene di avere prove sufficienti, pronuncia il verdetto. Il nostro cervello fa qualcosa di molto simile, ma lo fa in silenzio e spesso in una frazione di secondo, talvolta in poche centinaia di millisecondi, tanto che a noi sembra che l’idea sia nata all’improvviso.
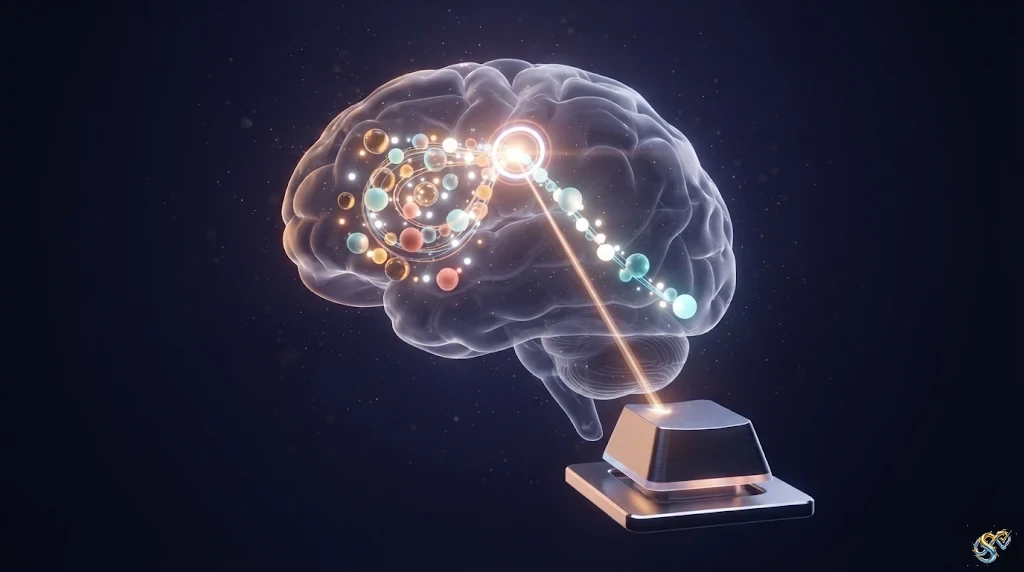
Registrando l’attività elettrica del cervello tramite elettroencefalografia (EEG), i ricercatori hanno individuato un segnale che cresce gradualmente mentre si forma la decisione, un po’ come una barra di caricamento che sale fino a toccare il 100%. Questo andamento viene chiamato accumulo verso una soglia: finché il segnale non raggiunge un certo livello, la decisione non scatta.
C’è però un dettaglio fondamentale: i neuroni non lavorano come un orologio svizzero perfetto, perché la loro attività è accompagnata da una sorta di rumore di fondo. Di conseguenza, la barra di caricamento non sale sempre in linea retta, ma può oscillare avanti e indietro tra le diverse opzioni. È anche per questo che non siamo sempre identici a noi stessi da un giorno all’altro: anche se i nostri gusti restano abbastanza stabili, un giorno può vincere la crostata e un altro giorno la ciambella.
-
Il cervello riceve le informazioni visive o riconosce le opzioni disponibili, tenendo conto anche dei desideri interni.
-
L’attività neurale inizia a salire progressivamente, raccogliendo prove a favore della scelta.
-
Il rumore neurale può far fluttuare il segnale lungo il percorso, rendendo alcune decisioni più rapide e altre più lente.
-
Quando il segnale tocca la soglia decisionale, scatta l’impegno verso la scelta e viene preparato il movimento per attuarla.
L’esperimento dei palloncini colorati e il ritmo del pensiero
Nell’articolo di Imaging Neuroscience, i ricercatori hanno messo alla prova queste idee chiedendo ai partecipanti di svolgere un compito semplice ma ben studiato con i palloncini colorati. In alcune prove compariva un palloncino con due colori diversi, lasciando la persona libera di scegliere quale preferiva. In altre prove compariva un palloncino di un solo colore, imponendo una decisione forzata.
Ogni volta che i partecipanti arrivavano a una decisione, premevano un pulsante con la mano destra, permettendo agli studiosi di misurare i tempi di reazione e di osservare l’andamento del segnale cerebrale proprio negli istanti che precedevano la scelta. Non c’era una fretta estrema imposta da un conto alla rovescia, così il processo poteva svolgersi in modo naturale.
Il risultato è stato chiaro e sorprendente: sia nelle scelte libere sia in quelle forzate, il segnale cerebrale legato alla formazione della decisione è salito in modo molto simile, come una barra di caricamento che raggiunge quasi lo stesso livello massimo poco prima del movimento. Ancora più interessante, la pendenza della salita cambiava in base alla rapidità della scelta: quando la persona decideva in fretta, il segnale saliva più ripidamente, mentre quando esitava di più, la salita era più dolce.
| Aspetto osservato | Scelta libera (due colori) | Decisione forzata (un colore) | Significato per il cervello |
| Tipo di valutazione |
Confronto tra opzioni guidato da preferenze e obiettivi interni. |
Riconoscimento e impegno su una singola opzione visibile. |
Entrambe richiedono di arrivare a una decisione prima di agire. |
| Andamento del segnale |
Crescita graduale fino a un livello simile prima del pulsante. |
Crescita graduale fino a un livello simile prima del pulsante. |
Stessa logica di accumulo verso una soglia. |
| Velocità di salita |
Più ripida nelle scelte rapide, più graduale in quelle lente. |
Più ripida nelle scelte rapide, più graduale in quelle lente. |
La velocità dell’accumulo riflette la forza e la chiarezza delle prove. |
Libero arbitrio, automatismo e senso di identità
Se il cervello usa lo stesso tipo di accumulo per scegliere tra due colori e per prendere l’unico colore disponibile, significa forse che le nostre scelte libere sono un’illusione o che sono più automatiche di quanto crediamo? Questa domanda ricorda i celebri esperimenti condotti negli anni Ottanta dal neuroscienziato Benjamin Libet e dai suoi colleghi, in cui l’attività cerebrale aumentava prima che le persone diventassero consapevoli della propria intenzione di muoversi.
Quegli studi hanno alimentato per decenni discussioni appassionate sul libero arbitrio e sul ruolo della coscienza. Tuttavia, guardare solo alla forma della barra di caricamento racconta metà della storia. Il contenitore, cioè il meccanismo che accumula prove fino a una soglia, può essere condiviso, ma ciò che viene accumulato nasce dalla nostra storia personale.
Le prove che il cervello mette insieme durante una scelta libera derivano da chi siamo: dai nostri gusti, dalle nostre esperienze passate, dalle nostre priorità e dalle piccole euristiche che usiamo ogni giorno. Due ragazzi possono scegliere la stessa canzone o lo stesso dolce seguendo un andamento neurale simile, ma per motivi del tutto personali. Per questo, più che chiederci se una scelta sia automatica o libera in astratto, ha senso chiedersi che cosa renda una scelta davvero nostra.
-
Il meccanismo di accumulo è condiviso tra scelte libere e forzate.
-
Il contenuto delle prove in una scelta libera dipende da preferenze, obiettivi e vissuto personale.
-
La rapidità con cui decidiamo spesso ci sorprende perché l’accumulo avviene prima che ce ne accorgiamo consapevolmente.
Approfondimenti tecnici dallo studio su Imaging Neuroscience
Per chi desidera addentrarsi nella parte più tecnica e metodologica della ricerca pubblicata su Imaging Neuroscience da Lauren C. Fong, Paul M. Garrett, Philip L. Smith, Robert Hester, Stefan Bode e Daniel Feuerriegel, questa sezione esamina nel dettaglio il disegno sperimentale, i segnali elettrofisiologici analizzati, il pre-processing del segnale e i modelli statistici impiegati.
Disegno sperimentale, stimoli e controllo motorio
Lo studio ha coinvolto 50 adulti di età compresa tra 18 e 39 anni (età media $M_{age} = 20,88$; 17 uomini e 33 donne), di cui 42 destrimani, con 49 partecipanti inclusi nelle analisi finali dopo l’esclusione di un soggetto a causa di dati EEG eccessivamente rumorosi. L’esperimento è stato approvato dal Comitato etico per la ricerca umana dell’Università di Melbourne (numero di approvazione 27017).
Gli stimoli consistevano in palloncini singoli o bicolore presentati su sfondo nero, utilizzando quattro colori campionati a intervalli di $90^\circ$ su una ruota cromatica CIELAB (centrata su $L = -54$, $a = 18$, $b = -8$, raggio $108,82\text{ mm}$): arancione ($43^\circ$, RGB $[206, 104, 0]$), verde ($133^\circ$, RGB $[19, 144, 0]$), blu ($223^\circ$, RGB $[0, 176, 238]$) e rosa ($313^\circ$, RGB $[236, 0, 216]$). L’uso di colori equidistanti sulla ruota CIELAB ha permesso di mantenere una luminanza approssimativamente equivalente e di ridurre i bias legati alla semplice salienza visiva.
-
Struttura delle prove: ogni partecipante ha completato 8 blocchi da 36 prove (288 prove totali, precedute da almeno un blocco di pratica da 36 prove).
-
Condizioni iniziali: nelle prove volontarie veniva mostrato un palloncino bicolore (due opzioni disponibili), mentre nelle prove forzate compariva un palloncino monocolore (una sola opzione specificata), con una cornice narrativa legata alla raccolta di palloncini per una festa a tema arcobaleno senza premi o penalità esplicite.
-
Isolamento della scelta dalla selezione dell’effettore: i partecipanti premevano il tasto + su un tastierino numerico con il dito medio della mano destra nel momento in cui si impegnavano nella decisione (definendo il tempo di reazione decisionale, RT), senza limiti di tempo rigidi. Poiché tutte le risposte iniziali erano assegnate alla stessa mano destra, il disegno ha evitato la competizione bilaterale tra effettori durante la fase decisionale.
-
Fase successiva e cambio di idea: dopo la risposta iniziale, il fissaggio diventava grigio per 1500 ms mantenendo il palloncino sullo schermo, seguiva la segnalazione della scelta tramite tasti 1 e 3 con gli indici sinistro o destro, e nella metà delle prove compariva una seconda fase di change-of-mind (CoM, con rimozione di un colore nelle prove inizialmente volontarie o aggiunta di un nuovo colore in quelle forzate), non analizzata in questo articolo.
Sul piano comportamentale, le decisioni forzate sono risultate più rapide ($M = 0,86\text{ s}$) rispetto alle decisioni volontarie ($M = 1,10\text{ s}$), con una differenza significativa ($t(48) = 6,07$, $p < 0,001$, IC al $95\%$ $[0,15, 0,29]$, $d_z = 0,87$) e distribuzioni dei RT asimmetriche positivamente (simili a distribuzioni ex-Gaussiane). Inoltre, i RT delle prove forzate erano ben superiori ai tempi di semplice reazione ($\sim 235\text{ ms}$) o di discriminazione visiva ($\sim 150\text{ ms}$), indicando una reale elaborazione decisionale e il mantenimento della scelta in memoria.
Acquisizione EEG, deconvoluzione RIDE e trasformazione CSD
L’attività EEG è stata registrata a una frequenza di campionamento di 512 Hz mediante un sistema BioSemi Active Two a 64 elettrodi sullo scalpo (con elettrodi CMS e DRL), più 8 elettrodi esterni posizionati sulle mastoidi sinistra e destra, sul canto esterno di ciascun occhio e sopra e sotto il centro di ciascun occhio. Il pre-processing è stato eseguito in MATLAB R2022b con EEGLAB v2023.1, includendo ispezione visiva per canali rumorosi (media $0,24$, intervallo $0\text{–}3$) e artefatti ampi, average reference, filtro passa-basso a 40 Hz, rimozione di AFz per compensare il deficit di rango, filtro passa-alto a 0,1 Hz per migliorare la stazionarietà dell’Independent Component Analysis (ICA), rimozione delle componenti legate ad ammiccamenti e saccadi, interpolazione spline sferica, segmentazione rispetto all’esordio dello stimolo ($-2000\text{ ms}$ a $+4000\text{ ms}$) con baseline pre-stimolo di 200 ms ed esclusione di epoche con escursioni superiori a $\pm 200\ \mu\text{V}$.
Per evitare che componenti allineate allo stimolo (stimulus-locked) contaminassero i segnali allineati alla risposta (response-locked), i ricercatori hanno applicato la Residue Iteration Decomposition (RIDE). Il modello ha scomposto i dati a singola prova in tre sottocomponenti:
-
Sottocomponente S (allungata a $0\text{–}800\text{ ms}$ post-stimolo per una rimozione conservativa dell’attività evocata dallo stimolo).
-
Sottocomponente R ($-600\text{ ms}$ a $-200\text{ ms}$ rispetto alla risposta).
-
Sottocomponente C ($200\text{–}1000\text{ ms}$ post-stimolo, sensibile alla variabilità di latenza tra le prove).
La sottocomponente S stimata è stata sottratta da ciascuna epoca prima di estrarre le epoche allineate alla risposta (da $-1200\text{ ms}$ a $+300\text{ ms}$), mantenendo la baseline pre-stimolo per ridurre contaminazioni motorie precoci. Successivamente, i dati sono stati trasformati in Current Source Density (CSD) tramite il CSD Toolbox (costante $m = 4$, $\lambda = 0,00001$), aumentando la risoluzione spaziale locale, riducendo la conduzione di volume e limitando la sovrapposizione tra segnali centro-parietali (CPP) e segnali motori fronto-centrali. In media sono state conservate 258 epoche su 288 per partecipante (intervallo $214\text{–}285$).
Analisi dei tre segnali neurofisiologici e modellazione statistica
Gli autori hanno esaminato tre segnali chiave per verificare le due proprietà canoniche dell’accumulo verso una soglia nei modelli di campionamento sequenziale (come il Diffusion Decision Model, DDM): (i) pendenze (slopes) prima della risposta che scalano inversamente con i RT (pendenze più ripide per risposte più rapide, coerenti con il drift rate) e (ii) ampiezze pre-risposta che convergono verso un livello comune indipendentemente dai RT (coerenti con un decision boundary fisso).
Per le ampiezze Mu/Beta (MB, $8\text{–}30\text{ Hz}$), è stata applicata convoluzione con Morlet wavelet complesse da $1$ a $30\text{ Hz}$ a passi di $1\text{ Hz}$ (cicli crescenti linearmente da $3$ a $10$), convertendo in decibel (dB) rispetto alla mediana di tutte le prove per partecipante con baseline da $-500\text{ ms}$ a $-300\text{ ms}$ pre-stimolo.
Le finestre temporali a priori sono state impostate a $-130\text{ ms}$ fino a $-70\text{ ms}$ rispetto alla risposta per l’ampiezza media pre-risposta (tenendo conto di un ritardo motorio stimato di $\sim 70\text{ ms}$ tra decisione ed esecuzione motoria) e $-300\text{ ms}$ fino a $-70\text{ ms}$ per la pendenza stimata tramite regressione lineare su singola prova. I RT sono stati trasformati in logaritmo e z-scored all’interno di ciascun partecipante per isolare la varianza intra-soggetto, inserendoli in linear mixed-effects models (LMM) con struttura casuale massimale:
con ripiegamento su intercetta casuale $\text{EEG}_{\text{measure}} \sim 1 + \text{RT} + (1 \mid \text{pID})$ in caso di fit singolare o mancata convergenza, affiancati da analisi mass-univariate con cluster-based permutation tests ($10.000$ permutazioni, soglia $p < 0,01$ non corretta per la formazione dei cluster, $\alpha = 0,05$ a due code) tramite il Decision Decoding Toolbox (DDTBOX) e da Bayes Factor ($BF_{10}$, prior di Cauchy $r = 0,707$).
-
Centro-Parietal Positivity (CPP, elettrodo Pz): mostra un accumulo positivo verso un livello comune prima della risposta sia nelle prove volontarie sia in quelle forzate, senza differenze sistematiche di ampiezza pre-risposta legate ai RT (volontarie: $\beta = 1,55$, $SE = 1,34$, $t(50,38) = 1,15$, $p = 0,255$; forzate: $\beta = 1,20$, $SE = 0,75$, $t(6173,33) = 1,60$, $p = 0,109$) e con pendenze più ripide per RT più brevi in entrambe le condizioni (volontarie: $\beta = -0,02$, $SE = 0,005$, $t(48,29) = -4,03$, $p < 0,001$; forzate: $\beta = -0,02$, $SE = 0,01$, $t(41,81) = -3,34$, $p = 0,002$). Ciò supporta il ruolo del CPP come correlato sovramodale dell’accumulo di evidenza anche in scelte interne basate su preferenze.
-
Ampiezze Mu/Beta (MB, elettrodo C3, emisfero sinistro controlaterale alla mano destra): mostrano una riduzione graduale (valori in dB più negativi) che riflette il progressivo rilascio dell’inibizione motoria e converge a un livello pre-risposta simile indipendentemente dai RT (volontarie: $\beta = 0,03$, $SE = 0,07$, $t(54,46) = 0,43$, $p = 0,665$; forzate: $\beta = -0,06$, $SE = 0,09$, $t(47,34) = -0,75$, $p = 0,456$), con pendenze legate ai RT (nelle prove volontarie nella finestra predefinita $\beta = 0,002$, $SE = 0,001$, $t(5619,08) = 1,47$, $p < 0,001$, e in finestre mass-univariate per entrambe le condizioni), indicando un accumulo di evidenza nel sistema motorio in assenza di forte pressione temporale.
-
Left-Hemisphere Readiness Potential (LHRP, elettrodo C3): cresce in negatività fino a un livello simile prima della risposta, ma con evidenze deboli o non sostenute nei test mass-univariate per la modulazione da parte dei RT sia sulle pendenze (volontarie: $\beta = 0,01$, $SE = 0,005$, $t(49,9) = 2,42$, $p = 0,019$; forzate: $\beta = -0,01$, $SE = 0,01$, $t(48,48) = -1,03$, $p = 0,306$) sia sulle ampiezze pre-risposta (volontarie: $\beta = -0,56$, $SE = 0,99$, $t(6038) = -0,57$, $p = 0,571$; forzate: $\beta = -3,53$, $SE = 1,34$, $t(45,37) = -2,62$, $p = 0,012$, senza cluster significativi sopravvissuti alle correzioni per confronti multipli e con $BF_{10} < 3$). Inoltre, nei dati trasformati in CSD con risposta a singolo effettore non emergeva una classica negatività RP centrata su Cz. Questo suggerisce che, a parità di selezione dell’effettore, il LHRP su C3 funzioni più come un cancello motorio tardivo specifico per l’effettore che come una variabile decisionale in evoluzione.
Limiti metodologici e prospettive di modellazione congiunta
Gli autori evidenziano diversi punti aperti per la ricerca futura: l’uso di un disegno a singolo effettore limita il confronto diretto con studi a due mani o con competizione tra effettori su LRP e RP (come nei modelli COINTOB o negli accumulatori stocastici per azioni auto-iniziate); l’assenza di manipolazioni esplicite di urgenza o scadenze non consente ancora di verificare come cambino i margini decisionali o la contingent negative variation (CNV) sotto pressione temporale; e l’integrazione futura con modelli gerarchici DDM e modelli di corsa (race models) permetterà di collegare direttamente pendenze del CPP e soglie motorie ai parametri latenti del modello.
Traduzione o Sintesi divulgativa dell’abstract ai sensi del Diritto di Citazione per fini di discussione e divulgazione scientifica (art. 70 L. 633/1941). La disponibilità dello studio completo, in accesso libero o riservato, è verificabile tramite il link del DOI nel box sottostante.
Abstract
Le decisioni volontarie sono state precedentemente descritte in base alla loro origine cerebrale e alle modalità di preparazione delle azioni corrispondenti alla scelta. Tuttavia, i processi attraverso i quali queste decisioni, guidate internamente, si formano e si traducono in azione rimangono poco chiari. Abbiamo verificato se le caratteristiche neurali dell’accumulo di prove e della preparazione motoria, già note nel processo decisionale percettivo, si osservano anche durante le decisioni volontarie. Quarantanove adulti hanno effettuato decisioni volontarie (libera scelta tra due opzioni) e forzate (singola scelta specificata) mentre veniva registrata l’attività elettroencefalografica. Per isolare la formazione della decisione dalla selezione dell’azione, tutte le risposte sono state fornite premendo un tasto con la mano destra. Dopo aver applicato la deconvoluzione del segnale e le trasformazioni di densità di corrente, abbiamo esaminato tre segnali: la positività centro-parietale (CPP), le ampiezze Mu/Beta (8-30 Hz) e un potenziale di preparazione dell’emisfero sinistro controlaterale alla mano che ha effettuato la risposta. Sia per le decisioni volontarie che per quelle forzate, le ampiezze CPP e Mu/Beta hanno mostrato dinamiche di accumulo-confine caratteristiche: le risposte più rapide presentavano segnali di rampa più ripidi che convergevano a livelli di ampiezza pre-risposta stereotipati. Anche il potenziale di preparazione dell’emisfero sinistro ha mostrato convergenza a un livello pre-risposta, ma con prove meno affidabili di una scalatura della pendenza dipendente dal tempo di risposta (RT), simile a un gate motorio tardivo specifico dell’effettore piuttosto che a una variabile decisionale in evoluzione. Anche le ampiezze delle forme d’onda nel corso del tempo di questi segnali non differivano in modo affidabile tra decisioni volontarie e forzate. I nostri risultati indicano che, come le decisioni percettive, anche le scelte volontarie sono formate da un processo di accumulo graduale che culmina in un’azione motoria, con il CPP che indica una variabile decisionale in evoluzione e Mu/Beta che indica la preparazione motoria specifica dell’effettore.
Lauren C. Fong, Paul M. Garrett, Philip L. Smith, Robert Hester, Stefan Bode, Daniel Feuerriegel. Tracing the neural trajectories of evidence accumulation and motor preparation processes during voluntary decisions. Imaging Neuroscience, 2026; 4 DOI: 10.1162/IMAG.a.1184


 by
