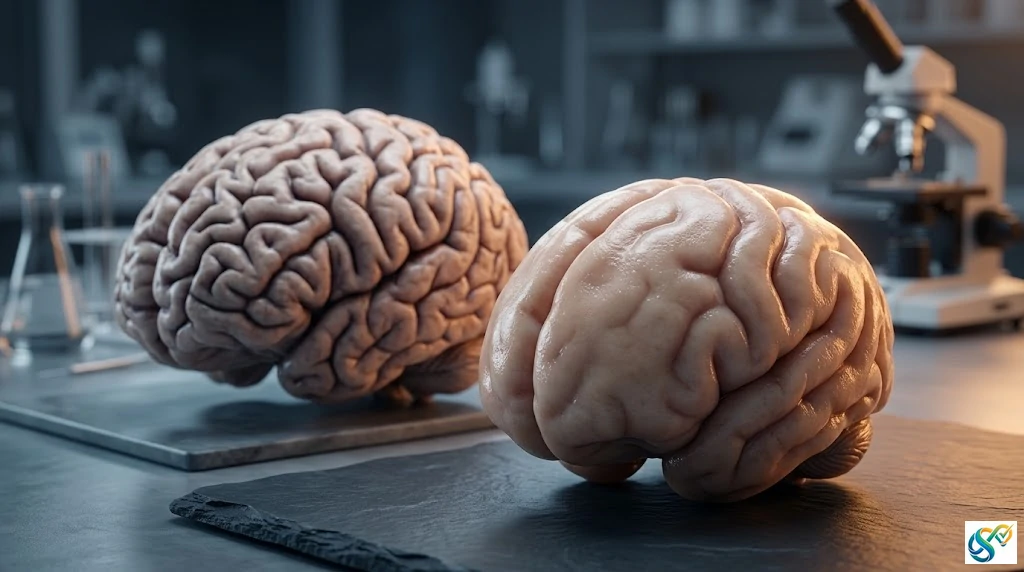
Il cervello dei primati affascina da sempre la comunità scientifica per la sua straordinaria complessità e per le sue strutture anatomiche peculiari. Nella stragrande maggioranza delle specie di primati, la corteccia cerebrale si presenta ampiamente sviluppata e ricoperta da una rete fitta di pieghe, creste e solchi che ne aumentano la superficie totale, una condizione nota come girencefalia. Questo ripiegamento caratteristico, visivamente simile alla superficie di una noce, consente di racchiudere miliardi di cellule nervose in uno spazio contenuto, gettando le basi per capacità cognitive avanzate. Tuttavia, la natura offre eccezioni sorprendenti a questa regola: le scimmie marmose comuni, note scientificamente come Callithrix jacchus o uistitì, possiedono una corteccia cerebrale quasi del tutto liscia e priva di solchi visibili, una condizione definita lissencefalia.
Un dettagliato studio condotto dai ricercatori del Centro tedesco per i primati (DPZ) e dell’Istituto Leibniz per la ricerca sui primati di Göttingen, pubblicato sulla prestigiosa rivista Science Advances, ha identificato i meccanismi cellulari, genetici e di sviluppo che spiegano questa apparente anomalia evolutiva.
Architettura cerebrale ed evoluzione dei primati
Per comprendere le ragioni alla base di una corteccia priva di circonvoluzioni, è necessario analizzare il percorso evolutivo dei primati. Le analisi filogenetiche indicano che l’antenato comune di tutti i primati moderni possedeva un cervello di dimensioni moderate con un certo grado di ripiegamento. Nel corso di milioni di anni, mentre la linea evolutiva che ha portato agli esseri umani e alle scimmie del Vecchio Mondo ha espanso la superficie corticale incrementando la formazione di pieghe, alcune specie di scimmie del Nuovo Mondo come le marmose hanno seguito una traiettoria opposta.
Nelle marmose si è verificato un fenomeno descritto dai biologi come nano evolutivo o riduzione secondaria (secondary lissencephaly). Questo processo ha ridotto la taglia corporea complessiva dell’animale e, di conseguenza, le dimensioni del suo cervello. Nonostante queste dimensioni ridotte e la superficie liscia, la marmosa conserva la composizione cellulare di base tipica degli altri primati, suggerendo che le istruzioni genetiche generali per costruire un cervello complesso siano rimaste intatte, ma siano state modificate nel ritmo e nella portata dei singoli processi cellulari.
Il ruolo chiave delle cellule progenitrici neurali
Durante la vita embrionale, la costruzione della corteccia cerebrale è affidata alle cellule progenitrici neurali (NPC), particolari cellule staminali divise in due popolazioni principali: le cellule progenitrici apicali (AP) e le cellule progenitrici basali (BP). Le cellule apicali risiedono nella zona ventricolare (VZ), adiacente ai ventricoli cerebrali, dove si dividono per generare sia altre cellule staminali sia i progenitori basali. Questi ultimi migrano verso l’esterno per popolare la zona subventricolare (SVZ), il luogo in cui si concentra la produzione massiccia della maggior parte dei neuroni.
Nelle specie con un cervello grande e fortemente ripiegato, come l’uomo o il macaco, la zona subventricolare si espande rapidamente diventando la struttura dominante durante la neurogenesi. Nelle marmose, al contrario, la zona ventricolare rimane la struttura prevalente per quasi tutto il periodo dello sviluppo. I ricercatori hanno individuato le cause di questa marcata differenza in tre elementi fondamentali:
-
Sincronia e velocità del ciclo cellulare: Le cellule progenitrici apicali delle marmose procedono lungo il ciclo cellulare a una velocità notevolmente inferiore rispetto a quelle umane.
-
Tassi di proliferazione e morfologia: I progenitori basali presentano una struttura morfologica più semplice e meno ramificata, riducendo la loro capacità naturale di moltiplicarsi.
-
Temporalità dello sviluppo: La finestra temporale in cui i progenitori possono moltiplicarsi ad alto ritmo è decisamente più breve nelle marmose rispetto ad altri primati.
La combinazione di questi fattori limita la quantità totale di neuroni generati, traducendosi in una superficie corticale più piccola e priva della spinta meccanica necessaria per creare le classiche pieghe.
Il contributo dei modelli in vitro e degli organoidi cerebrali
Lo studio delle fasi precoci dello sviluppo cerebrale nei primati è storicamente ostacolato da vincoli etici e dalla limitata disponibilità di campioni di tessuto fetale. Per superare queste difficoltà, il team di ricerca ha utilizzato gli organoidi cerebrali, sofisticate colture tridimensionali in miniatura coltivate in laboratorio a partire da cellule staminali pluripotenti indotte (iPSC).
Questi “mini-cervelli” riproducono fedelmente l’organizzazione spaziale, la polarità cellulare e la sequenza cronologica tipiche delle prime fasi di sviluppo dell’organo reale. Confrontando gli organoidi ottenuti da cellule di marmosa comune, di essere umano e di macaco rhesus, e incrociando i dati con analisi su tessuti fetali reali, gli scienziati hanno potuto tracciare con altissima precisione l’evoluzione delle singole popolazioni cellulari.
È emerso che un organoide di marmosa coltivato in laboratorio per 50 giorni corrisponde in modo quasi perfetto allo stadio di maturazione di un cervello fetale di marmosa al 90° giorno di gestazione, confermando l’affidabilità di questi modelli in vitro per la ricerca scientifica.
Approfondimenti tecnici e analisi molecolari dallo studio sperimentale
Di seguito vengono analizzati nel dettaglio i parametri quantitativi, cinetici, trascrizionali e morfologici emersi dalle diverse metodologie sperimentali utilizzate nel lavoro pubblicato.
Cinematica del ciclo cellulare e frazione di quiescenza
L’analisi della durata del ciclo cellulare nelle cellule progenitrici apicali (AP) della zona ventricolare (VZ) è stata condotta mediante marcatura cumulativa con il nucleotide sintetico 5-etil-2′-deossiuridina (EdU). La misurazione ha rivelato marcate divergenze tra le specie:
-
Durata totale del ciclo cellulare ($T_c$): Nei progenitori apicali dell’essere umano la durata totale del ciclo cellulare è risultata pari a 57.2 ore, mentre nelle marmose il ciclo si allunga fino a 68.5 ore.
-
Fase di saturazione della marcatura: Nelle strutture ventricolari umane, la percentuale di cellule EdU-positive raggiunge un altopiano saturante dell’83.9% dopo 60 ore. Nelle marmose, la marcatura si stabilizza a un livello molto inferiore, fermandosi al 48.7% anche estendendo l’osservazione a 84 ore.
-
Caratterizzazione delle cellule EdU-negative: L’analisi dell’espressione del marcatore di proliferazione Ki67 sulle cellule che non hanno incorporato EdU al termine del periodo di saturazione ha mostrato che il 57.51% mantiene la positività per Ki67 (cellule attive nel ciclo ma con fasi $G_1$ o $S$ fortemente rallentate), mentre il 42.49% risulta Ki67-negativo, indicando l’ingresso di una quota consistente di progenitori in uno stato di quiescenza temporanea o permanente.
Cambiamenti del piano di divisione cellulare e delaminazione
Il passaggio dalla fase a dominanza ventricolare (VZ) a quella a dominanza subventricolare (SVZ) nelle marmose non avviene in modo graduale ma attraverso una transizione repentina attorno al novantesimo giorno di gestazione (GD90), rispecchiata dal cinquantesimo giorno di coltura (d50) negli organoidi. I meccanismi biologici alla base di questo evento comprendono:
-
Orientamento del fuso mitotico in anafase: Nelle cellule progenitrici apicali in anafase, misurate rispetto alla superficie ventricolare definita dalla proteina delle giunzioni occludenti ZO-1, si assiste a una progressiva rotazione del piano di clivaggio. Al giorno 30 di coltura negli organoidi di marmosa, le divisioni verticali ($61^\circ – 90^\circ$) rappresentano il 43.5%, quelle oblique ($31^\circ – 60^\circ$) il 36.7% e quelle orizzontali ($0^\circ – 30^\circ$) il 19.8%. Entro il giorno 50, la quota di divisioni orientate in modo obliquo od orizzontale aumenta in modo significativo, favorendo la distacco delle cellule figlie dal polo apicale e la loro delaminazione verso la zona subventricolare.
-
Profilo di espressione genica durante la delaminazione: Sequenziando l’RNA di popolazioni di progenitori isolati mediante FACS (Fluorescence-Activated Cell Sorting) con marcatori specifici (GLAST, LeX, Prominin-1), si nota tra il giorno 30 e il giorno 50 una drastica sottoregolazione dei geni coinvolti nel mantenimento dello stato di staminalità (PRDM16, SALL4, WNT3A) e nell’assemblaggio delle ciglia primarie (CFAP74, DEUP1). Simultaneamente, si registra un forte aumento dell’espressione dei fattori di rimodellamento della matrice extracellulare (COL1A1, MMP2, THBS2) e dei regolatori del differenziamento neuronale (NEUROD6, NEUROD2).
Profilo molecolare e classificazione morfologica dei progenitori basali
Un ulteriore elemento determinante risiede nella limitata capacità di moltiplicazione dei progenitori radiali basali (bRG). Sebbene la zona subventricolare della marmosa contenga un’abbondanza relativa di cellule bRG paragonabile a quella dell’uomo o del furetto, queste cellule producono un numero contenuto di neuroni a causa di vincoli morfologici e genetici specifici:
-
Espressione del gene PALMD: Il gene PALMD (Palmdelphin), noto per promuovere l’espansione e la formazione di prolungamenti nelle cellule bRG, presenta nei progenitori basali delle marmose livelli di trascrizione significativamente inferiori rispetto a quelli riscontrati nelle cellule umane, rimanendo su valori paragonabili a quelli delle cellule apicali indivise.
-
Classificazione dei morfotipi cellulari basali: L’analisi condotta su sezioni di corteccia fetale di marmosa al centesimo giorno di gestazione (GD100) mediante immunofluorescenza per la fosfo-vimentina (pVIM), un marcatore delle cellule gliali in mitosi, ha permesso di catalogare i progenitori basali in base al numero e all’orientamento dei loro prolungamenti:
-
Prolungamento basale singolo (b): Rappresenta il 79.27% della popolazione totale dei progenitori basali mitotici.
-
Prolungamenti apicale e basale (ab): Costituiscono il 10.36%.
-
Prolungamento apicale singolo (a): Rappresenta il 6.22%.
-
Morfologia multipolare (m, tipica dei progenitori intermedi bIP): Costituisce il 2.33%.
-
Prolungamento basale biforcuto (b-bf): Rappresenta appena l’1.81%.
-
In sintesi, oltre l’87.5% dei progenitori basali nelle marmose possiede una morfologia estremamente semplice caratterizzata da un singolo prolungamento, a differenza dell’elevata frequenza di morfotipi complessi e pluriramificati osservati nei primati dotati di un cervello fortemente ripiegato. Questa semplicità strutturale limita le interazioni con la matrice circostante e riduce la spinta proliferativa della zona subventricolare, impedendo l’espansione massiva della superficie corticale.
Traduzione abstract. La disponibilità dello studio completo, in accesso libero o riservato, è verificabile tramite il link del DOI nel box sotto se disponibile.
Abstract
La maggior parte dei primati possiede una neocorteccia ampia e fortemente ripiegata (girencefalica), una caratteristica presente nell’antenato comune dei primati. Al contrario, diverse specie di scimmie del Nuovo Mondo mostrano una neocorteccia relativamente piccola e in gran parte liscia e non ripiegata (lissencefalica). Un esempio rilevante è il callitrice comune, un modello sempre più utilizzato nelle neuroscienze. Questo fenotipo riflette probabilmente una riduzione evolutiva rispetto alla condizione ancestrale dei primati, implicando modifiche nei programmi di neurosviluppo. Una base essenziale per lo sviluppo della neocorteccia è l’attività e il comportamento delle cellule progenitrici neurali (NPC). In questo studio, identifichiamo adattamenti coordinati nella biologia delle NPC che orientano le traiettorie di neurosviluppo verso una riduzione delle dimensioni della neocorteccia. Combinando organoidi cerebrali di uistitì e umani con analisi del tessuto neocorticale fetale di uistitì e dati istologici precedentemente pubblicati, abbiamo scoperto molteplici adattamenti nei progenitori apicali e basali che convergono su una ridotta capacità dei progenitori, alterano le dinamiche precoci dei progenitori e probabilmente limitano la produzione neuronale, riducendo così le dimensioni e la struttura della neocorteccia dell’uistitì.
Lidiia Tynianskaia, Cesar Mateo Bastidas-Betancourt, Esther Marie Grewe, Julia Marie Kniep, Neringa Liutikaite, Nesil Esiyok, İrfan Burak Göloğlu, Sabrina Heide, Nancy Rüger, Dimitri Lindenwald, Charis Drummer, Stoyan Petkov, Nataliya Di Donato, Michael Heide. Coordinated neural progenitor adaptations contribute to primate neocortical downscaling. Science Advances, 2026; 12 (39) DOI: 10.1126/sciadv.aeg5563


 by
