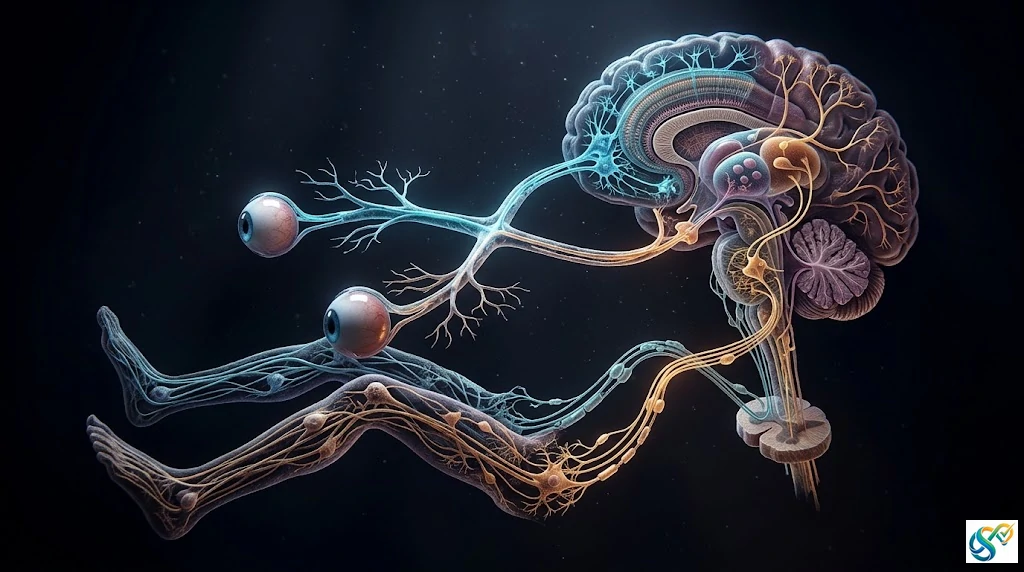
Se vi siete mai fermati a riflettere su come funziona il nostro corpo, vi sarete imbattuti in uno dei più grandi ed affascinanti rompicapi della biologia: il lato destro del nostro cervello controlla la parte sinistra del corpo, e viceversa.
Ogni volta che muovete la mano sinistra per prendere un bicchiere d’acqua, o quando sentite un pizzicotto sulla gamba sinistra, il segnale viaggia lungo cavi nervosi che ad un certo punto incrociano la linea mediana del sistema nervoso e raggiungono la metà opposta del cervello.
Ma per quale motivo la natura ha scelto un’architettura così complessa invece di collegare semplicemente il lato destro al lato destro e il lato sinistro al lato sinistro?
A dare una risposta del tutto nuova a questo enigma sono stati il dottor Martin Wessendorf e Daniel Wang, ricercatori del Dipartimento di Neuroscienze della University of Minnesota. In un approfondito studio pubblicato sulla rivista scientifica Frontiers in Neuroanatomy, i due studiosi propongono un’ipotesi evolutiva pionieristica: la struttura incrociata del nostro cervello non è un adattamento nato per uno scopo specifico, bensì una conseguenza ereditaria diretta di come si è evoluta la vista nei primi vertebrati comparsi sul nostro pianeta centinaia di milioni di anni fa.
Nelle prossime righe esploreremo questo viaggio straordinario attraverso la storia evolutiva delle nostre vie nervose, rendendo comprensibili a tutti, anche ai più giovani, i meccanismi segreti che governano la nostra testa.
Viaggio attraverso le autostrade nervose del nostro corpo
Per capire come il cervello sia diventato controlaterale (termine tecnico che significa proprio che gestisce il lato opposto), dobbiamo fare un piccolo tour all’interno del nostro sistema nervoso e osservare come viaggiano le informazioni.
Immaginiamo il sistema nervoso come una gigantesca rete autostradale su cui viaggiano continuamente due tipi di traffico:
-
I segnali sensoriali (in entrata): che portano al cervello le informazioni sul mondo esterno, come la vista, l’udito, il tatto o il dolore.
-
I segnali motori (in uscita): che portano i comandi dal cervello ai muscoli per farci muovere, correre o afferrare oggetti.
Vediamo come funzionano le principali corsie di questa autostrada biologica.
Vista: l’inversione delle immagini negli occhi
Tutto inizia con gli occhi. Il cristallino dell’occhio funziona esattamente come la lente di una fotocamera o di un proiettore: quando la luce entra nella pupilla, l’immagine viene capovolta e proiettata sulla retina al contrario. Ciò che si trova alla nostra destra si proietta sulla metà sinistra della retina di ciascun occhio, e quello che si trova alla nostra sinistra va a finire sulla metà destra.
I cavi elettrici che escono dagli occhi, chiamati nervi ottici, si incontrano in una struttura chiave situata alla base del cervello, il chiasma ottico. Qui avviene il primo grande incrocio: le fibre nervose che trasportano le immagini del campo visivo destro si separano e vengono indirizzate verso l’emisfero sinistro del cervello, e viceversa.
Nei vertebrati più antichi, così come nei mammiferi, questi segnali visivi arrivano direttamente a un centro di controllo fondamentale chiamato tetto ottico (che nei mammiferi prende il nome di collicolo superiore). Il tetto ottico è una struttura antica ed è in grado di elaborare mappe visive del mondo esterno in modo perfetto e speculare.
Tatto, dolore e vibrazioni: come il corpo parla al cervello
Le informazioni fisiche che percepiamo sulla pelle e nei muscoli raggiungono il cervello attraverso due vie nervose ben distinte, entrambe presenti in quasi tutti gli animali a quattro arti (tetrapodi, ovvero mammiferi, uccelli, rettili e anfibi):
-
La via delle colonne dorsali: questa via trasmette le sensazioni del tatto leggero, delle vibrazioni e della propriocezione (la capacità di percepire la posizione del nostro corpo nello spazio senza guardarlo). I segnali risalgono lungo la colonna vertebrale e poi incrociano la linea mediana nel tronco encefalico, situato appena sopra il midollo spinale, prima di raggiungere il cervello.
-
Il tratto spinotalamico: questa corsia trasporta invece i segnali del dolore, del prurito e della temperatura. A differenza delle colonne dorsali, il tratto spinotalamico incrocia la linea mediana immediatamente nel midollo spinale, proprio nel punto in cui entra il segnale, e poi sale fino al talamo, una grande stazione radio del cervello che smista i segnali.
I comandi per i movimenti: le vie motorie
Così come i segnali sensoriali salgono verso il cervello incrociandosi, anche i comandi motori scendono verso i muscoli eseguendo lo stesso incrocio:
-
La via tettospinale: parte dagli strati più profondi del tetto ottico e si collega al midollo spinale opposto. Se mentre camminate vedete un ostacolo improvviso con la coda dell’occhio e vi girate di scatto, è grazie a questo circuito rapido.
-
La via rubrospinal: nasce da una regione del mesencefalo chiamata nucleo rosso e scende verso il midollo spinale incrociando subito la linea mediana. Serve a coordinare i movimenti grandi degli arti negli animali.
-
Il sistema corticospinale: è il circuito più evoluto e raffinato, fondamentale negli esseri umani e nei primati. Nasce dalla corteccia cerebrale (la parte più esterna e complessa del cervello) e scende lungo il midollo spinale incrociandosi nel tronco encefalico. È la via che ci permette di muovere le dita con altissima precisione, come quando suoniamo il pianoforte o scriviamo.
Evoluzione come ingegnere risparmiatore
Di fronte a tutte queste vie incrociate, per decenni gli scienziati si sono chiesti se l’incrocio portasse un beneficio diretto alla sopravvivenza: forse serviva a rendere il cervello meccanicamente più solido? O a proteggere l’animale dai ferimenti? O forse era necessario per la geometria del movimento?
L’articolo del dottor Martin Wessendorf e di Daniel Wang smonta queste vecchie teorie e propone una prospettiva completamente nuova basata sull’economia biologica.
L’evoluzione lavora come un ingegnere conservativo: non progetta mai da zero quando deve creare qualcosa di nuovo, ma riutilizza le fondamenta, le strutture e i materiali che ha già a disposizione.
Gli antenati di tutti i vertebrati attuali, come i pesci senza mascelle vissuti nel periodo Cambriano oltre 500 milioni di anni fa, possedevano già un chiasma ottico e un tetto ottico perfettamente organizzati in modo controlaterale. Quando nel corso delle ere geologiche si sono evoluti il senso del tatto, dell’udito e infine il grande cervello dei mammiferi (la neocorteccia), la soluzione più semplice ed efficiente dal punto di vista energetico non era riprogettare da capo tutti i collegamenti, ma adeguarsi alla mappa incrociata che già esisteva per la vista.
Se la corteccia cerebrale si fosse evoluta con collegamenti diretti (dallo stesso lato), il cervello avrebbe dovuto aggiungere una quantità enorme di cavi per convertire continuamente le informazioni dal lato destro al lato sinistro, creando un ritardo nei riflessi e un costo energetico enorme. Rimanere incrociati è stato il modo più economico per risparmiare cavi e garantire risposte immediate e salvavita.
Approfondimenti tecnici e analisi comparata dei circuiti cerebrali
Per chi desidera comprendere nel dettaglio la rigorosa architettura neuroanatomica e filogenetica documentata nello studio pubblicato su Frontiers in Neuroanatomy, riportiamo di seguito l’analisi sistematica dei principali circuiti nervosi nei vertebrati, le eccezioni alla regola ed il quadro teorico quantitativo presentato dagli autori.
Mappatura comparativa dei circuiti nervosi vertebrati
I dati raccolti dalla letteratura scientifica di anatomia comparata mostrano una precisa successione temporale ed evolutiva nella comparsa dell’organizzazione controlaterale.
+-----------------------------------------------------------------------------------+
|               CRONOLOGIA EVOLUTIVA DEI CIRCUITI CONTROLATERALI                    |
+-----------------------------------------------------------------------------------+
| 1. Sistema Visivo Retino-Tettale (Cambriano, oltre 500 mya)                       |
|    └─ Presente in tutti i vertebrati (Agnati, Chondrichthyes, Osteichthyes, Tetrapodi)|
+-----------------------------------------------------------------------------------+
| 2. Circuiti Somatosensoriali e Vie Motorie del Tronco Encefalico (330-400 mya)     |
|    ├─ Tratto Spinotalamico (STT) e Colonne Dorsali / Lemnisco Mediale (DC/ML)     |
|    └─ Tratto Tettospinale e Tratto Rubrospinale                                   |
+-----------------------------------------------------------------------------------+
| 3. Sistema Corticospinale Neocorticale (Mammiferi, circa 165 mya)                  |
|    └─ Cooptazione della via somatosensoriale per il controllo motorio fine        |
+-----------------------------------------------------------------------------------+
Dettaglio delle vie sensoriali
-
Sistema Visivo (Retino-Tettale e Retino-Talamico): Le assoni delle cellule gangliari retiniche si riorganizzano all’interno del chiasma ottico. Le fibre che rappresentano il campo visivo destro proiettano al tetto ottico sinistro e al talamo sinistro. Nei mammiferi con visione binoculare frontale (es. predatori), la percentuale di assoni che incrocia nel chiasma si riduce rispetto agli animali con occhi laterali (es. prede), fenomeno descritto dalla legge di Newton-Müller-Gudden.
-
Via delle Colonne Dorsali / Lemnisco Mediale (DC/ML): I neuroni afferenti primari risalgono le colonne dorsali del midollo spinale fino ai nuclei delle colonne dorsali nel bulbo caudale. Qui fanno sinapsi con i neuroni di secondo ordine i cui assoni decussano immediatamente (lemnisco mediale) e proiettano al talamo somatosensoriale controlaterale (nucleo ventrale posteriore). Assente come tratto distinto nei pesci, questa via si riscontra in anfibi, rettili, uccelli e mammiferi, indicando la sua comparsa nell’antenato comune dei tetrapodi.
-
Tratto Spinotalamico (STT): Gli assoni nociceptivi ed epicritici primari fanno sinapsi nelle corna dorsali del midollo spinale. I neuroni spinotalamici proiettano i loro assoni attraverso la commissura bianca anteriore decussando nel midollo spinale stesso, per poi ascendere al talamo controlaterale. Il tratto spinotalamico è presente nei pesci cartilagenei (squali e razze), anfibi, rettili, uccelli e mammiferi.
-
Tratto Spinotettale: Trasporta informazioni somatosensoriali al collicolo superiore. È organizzato in modo controlaterale nei mammiferi e negli uccelli, mentre appare bilaterale o ipsilaterale in anfibi e rettili.
Dettaglio delle vie motorie
-
Tratto Tettospinale: Ha origine negli strati profondi del tetto ottico / collicolo superiore. Gli assoni decussano nel mesencefalo dorsale e scendono nel midollo spinale cervicale controlaterale. Media i movimenti orientativi della testa e degli occhi in risposta a stimoli visivi, acustici o somatosensoriali. Conservato in gran parte dei tetrapodi e nei dipnoi.
-
Tratto Rubrospinale: Origina dai neuroni magnocellulari del nucleo rosso nel mesencefalo, incrocia immediatamente la linea mediana nella decussazione tegmentale ventrale e discende lungo il midollo spinale. Controlla la flessione dei muscoli degli arti nei tetrapodi. Negli esseri umani il nucleo rosso si è evoluto diventando prevalentemente parvocellulare, con proiezioni all’oliva inferiore, mentre il tratto rubrospinale spinale si è ridotto parallelamente al grande sviluppo del tratto corticospinale.
-
Tratto Corticospinale (CST): Origina dalla corteccia cerebrale (in gran parte dalla corteccia somatosensoriale e motoria primaria) e discende attraverso il tronco encefalico. A livello delle piramidi bulbari (caudale al bulbo), tra il $75\%$ e il $90\%$ delle fibre decussa la linea mediana proseguendo nel funicolo laterale del midollo spinale controlaterale. Ancestralmente, nei mammiferi basali, il tratto corticospinale terminava nel collo del corno dorsale svolgendo un ruolo di modulazione somatosensoriale. Nei primati e in specie ad elevata manualità, si è esteso al corno ventrale innervando direttamente i motoneuroni spinali.
Eccezioni all’organizzazione controlaterale
Non tutti i circuiti nervosi sono controlaterali. L’analisi anatomica rivela importanti eccezioni che confermano la regola generale:
-
Olfatto: È l’unico senso che raggiunge la corteccia cerebrale senza passare dal talamo. I neuroni del bulbo olfattivo proiettano prevalentemente in modo ipsilaterale alla corteccia olfattiva.
-
Gusto: I segnali gustativi provenienti dalla lingua salgono al talamo ipsilaterale e da qui alla corteccia gustativa primaria dello stesso lato. (Nota: sia l’olfatto che il gusto sono sensi chimici e non mappano lo spazio geometrico esteso, a differenza di vista, udito e tatto).
-
Tratto Corticobulbare: Innerva bilateralmente gran parte dei nuclei motori dei nervi cranici.
-
Tratto Vestibolospinale: Responsabile del mantenimento dell’equilibrio e della postura, proietta i suoi assoni in modo prevalentemente ipsilaterale (tratto vestibolospinale laterale) o bilaterale (tratto vestibolospinale mediale).
-
Cervelletto: Ciascun emisfero cerebellare coordina i movimenti del lato ipsilaterale del corpo. Le vie di ingresso somatosensoriali (es. tratto spinocerebellare dorsale) sono ipsilaterali o presentano una doppia decussazione (es. tratto spinocerebellare ventrale) per terminare dallo stesso lato di origine. Le connessioni con la corteccia cerebrale incrociano la linea mediana sia in ingresso (attraverso i nuclei pontini) sia in uscita (peduncolo cerebellare superiore verso il nucleo rosso o talamo), ripristinando il controllo ipsilaterale sul corpo.
Meccanismi genetici di guida assonale
La formazione delle decussazioni durante lo sviluppo embrionale è regolata da famiglie geniche altamente conservate:
-
Sistemi Slit / Robo: Le proteine Slit secrete sulla linea mediana interagiscono con i recettori Robo (Roundabout) presenti sui coni di crescita assonali per respingere gli assoni o consentirne l’attraversamento. Mutazioni nel gene umano ROBO3 causano la sindrome da paresi dello sguardo orizzontale con scoliosi progressiva (HGPPS), caratterizzata dall’assenza della decussazione delle piramidi bulbari.
-
Sistemi Efrenu / Eph: Le chinasi recettoriali Eph e i loro ligandi Efrina (es. EphA4, EphB1, Ephrin-B3) agiscono come barriere molecolari sulla linea mediana, determinando la percentuale di fibre che incrociano sia nel chiasma ottico che nella decussazione piramidale.
La teoria dell’economia di cablaggio (Wiring Economy)
La spiegazione quantitativa ed evolutiva proposta da Wessendorf e Wang si basa sull’ottimizzazione del costo metabolico e strutturale del sistema nervoso.
Il costo energetico di un assone può essere modellato in funzione della sua lunghezza $L$, del suo diametro $d$ e della frequenza dei potenziali d’azione $f$. Il volume assonale $V$ è proporzionale a:
L’energia metabolica necessaria per la conduzione dell’impulso e per il mantenimento del potenziale di riposo mediante la pompa $\text{Na}^+/\text{K}^+$-ATPasi cresce linearmente con la lunghezza e il volume dell’assone.
Quando la corteccia cerebrale dei mammiferi ha iniziato ad espandersi evolutivamente circa 165 milioni di anni fa, si è trovata ad interagire con un sistema sottocorticale (tetto ottico, talamo, midollo spinale) in cui i circuiti sensoriali e motori erano già storicamente incrociati da oltre 200 milioni di anni.
Se la neocorteccia si fosse sviluppata in modo ipsilaterale, avrebbe dovuto ricanalizzare tutte le proiezioni con percorsi più lunghi e complessi o aggiungere ulteriori decussazioni interemisferiche. Mantenendo la mappa controlaterale, la lunghezza complessiva dei tratti nervosi assonali $L_{\text{totale}}$ è stata minimizzata:
Ciò ha consentito di minimizzare i costi di cablaggio (wiring costs), ottimizzando la velocità di conduzione del segnale e riducendo al minimo il consumo calorico del cervello. La struttura incrociata del nostro cervello è quindi il risultato eccezionale di un’eredità storica integrata con il massimo risparmio energetico biologico.
Traduzione abstract. La disponibilità dello studio completo, in accesso libero o riservato, è verificabile tramite il link del DOI nel box sotto se disponibile.
Abstract
Negli esseri umani e nella maggior parte degli altri mammiferi, la corteccia motoria destra controlla i motoneuroni spinali che causano il movimento degli arti sul lato sinistro del corpo. Analogamente, il lato destro della corteccia cerebrale riceve prevalentemente informazioni sensoriali relative al lato sinistro del corpo e al lato sinistro del mondo esterno. Sebbene siano stati pubblicati numerosi studi (risalenti almeno a Cajal) che speculano sul valore adattativo di questa organizzazione controlaterale, ad oggi nessuno sembra averne esaminato la storia evolutiva. Il nostro studio analizza i principali circuiti organizzati controlateralmente presenti nel cervello dei vertebrati attuali e propone una nuova ipotesi sulla loro evoluzione. Abbiamo scoperto che la vista è organizzata controlateralmente in tutti i vertebrati finora studiati: l’input proveniente da ciascun campo visivo viene trasportato dal tratto ottico al tetto ottico controlaterale (ovvero, il collicolo superiore nei mammiferi) e lì mappato retinotopicamente. Inoltre, nella maggior parte dei tetrapodi, la somatosensazione e l’udito vengono trasportati rostralmente al prosencefalo da circuiti organizzati controlateralmente. Gli amnioti basali (gli antenati di rettili, uccelli e mammiferi) sembrano aver avuto sistemi motori organizzati controlateralmente, tra cui il tratto tettospinale e il tratto rubrospinale. Infine, l’ultimo antenato comune dei mammiferi sembra aver avuto una neocorteccia organizzata controlateralmente, incluso un tratto corticospinale. Concludiamo che la neocorteccia dei mammiferi si è evoluta in cervelli in cui molti circuiti motori e sensoriali principali erano già organizzati controlateralmente. Adattando a sua volta l’organizzazione controlaterale, la neocorteccia è stata in grado di integrarsi direttamente con questi circuiti senza il “costo di cablaggio” derivante dalla loro modifica.
Why is the right side of the brain responsible for the left side of the body? The evolutionary history of a puzzling trait, Frontiers in Neuroanatomy (2026). DOI: 10.3389/fnana.2026.1937941


 by
