Il c
ervello umano possiede un sistema di protezione straordinario e al tempo stesso problematico per la medicina moderna. Ogni giorno, miliardi di neuroni lavorano per permetterci di pensare, muoverci e ricordare. Per proteggere questa centrale operativa da batteri, virus e sostanze nocive che circolano nel sangue, l’evoluzione ha creato uno scudo quasi impenetrabile. Questa struttura prende il nome di barriera emato-encefalica.
Questa barriera funziona come una dogana estremamente severa. Se da un lato salva la vita impedendo alle infezioni di entrare nel tessuto cerebrale, dall’altro rappresenta il più grande ostacolo per la cura di malattie devastanti come la sclerosi laterale amiotrofica (SLA), il morbo di Parkinson, la malattia di Alzheimer e diverse forme di demenza frontotemporale.
I farmaci più avanzati oggi disponibili, come i complessi anticorpi monoclonali, incontrano enormi difficoltà nel superare questo muro protettivo. Quando un medico inietta questi farmaci nel sangue di un paziente, quasi tutta la dose rimane bloccata nei vasi sanguigni periferici. Si stima che appena 1 anticorpo su 10.000 riesca a penetrare effettivamente all’interno del cervello. Il restante 99,99% della cura viene perso, riducendo drasticamente l’efficacia delle terapie e costringendo i ricercatori a somministrare dosi elevate con possibili effetti collaterali.
I ricercatori dell’Università di Ottawa, sotto la guida del dottor Derrick Gibbings e con il lavoro della ricercatrice associata Huishan Guo, hanno sviluppato una soluzione innovativa composta da due componenti complementari. Una navetta biologica trasporta i farmaci attraverso i vasi sanguigni fino al tessuto cerebrale, mentre una targhetta molecolare trasforma gli anticorpi in veri e propri netturbini cellulari.
Il cavallo di Troia della biologia cellulare
Per superare i controlli della barriera emato-encefalica, il team di ricerca si è affidato a strutture già presenti nel corpo umano: le vescicole extracellulari. Si tratta di minuscole bolle sferiche prodotte naturalmente da quasi tutte le cellule dell’organismo, aventi il compito di scambiare messaggi, proteine e materiale genetico tra una cellula e l’altra.
Poiché le vescicole extracellulari utilizzano il linguaggio biologico standard del nostro corpo, le cellule dei vasi sanguigni cerebrali le riconoscono come materiale sicuro e innocuo. Funzionando come un vero e proprio cavallo di Troia biologico, queste micro-bolle nascondono al loro interno il farmaco, attraversano le pareti dei vasi sanguigni e rilasciano il carico direttamente nel tessuto nervoso.
L’utilizzo di veicoli naturali risolve uno dei principali problemi della somministrazione di farmaci nel sistema nervoso centrale, aprendo la strada al trasporto efficiente di molecole complesse senza provocare reazioni di rigetto o danneggiare i vasi sanguigni.
La gestione dei rifiuti cellulari tramite l’autofagia
Oltrepassare la barriera cerebrale costituisce soltanto metà della sfida. Una volta giunti all’interno del cervello, gli anticorpi tradizionali incontrano un secondo ostacolo biologico. Nelle malattie neurodegenerative, alcune proteine cambiano forma, si ripiegano in modo anomalo e formano aggregati proteici tossici che soffocano lentamente i neuroni.
Gli anticorpi convenzionali sono in grado di individuare questi agglomerati tossici e di legarsi ad essi con alta precisione. Tuttavia, non possiedono gli strumenti necessari per distruggerli ed eliminarli autonomamente. Gli aggregati rimangono bloccati all’interno della cellula, vanificando gran parte dell’effetto terapeutico.
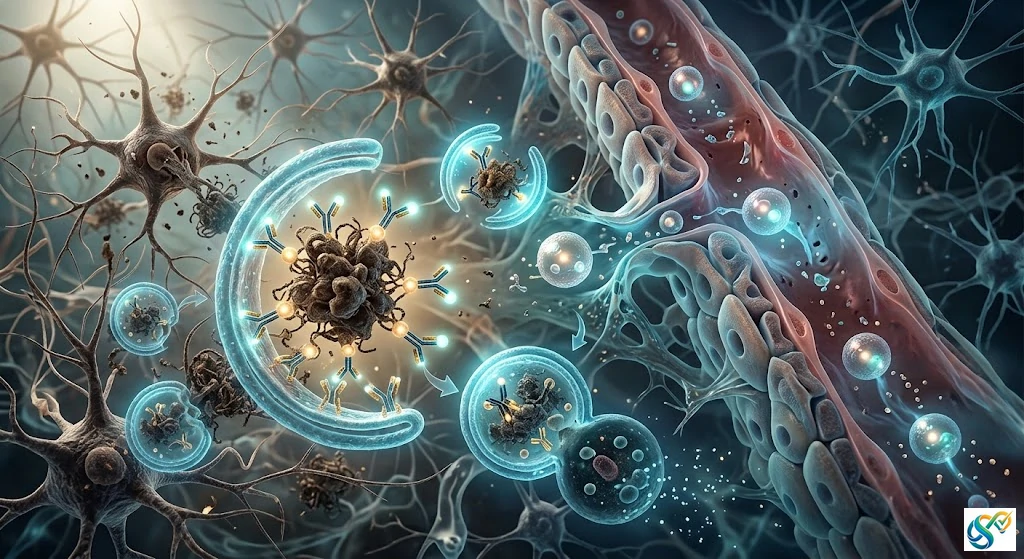
Per superare questo limite, i ricercatori hanno sfruttato il sistema di riciclaggio naturale interno alle cellule, noto come autofagia. Questo meccanismo fisiologico si attiva solitamente in condizioni di stress o carenza nutrizionale, raccogliendo gli scarti cellulari dannosi, racchiudendoli in vescicole speciali chiamate autofagosomi e sminuzzandoli in componenti base da riutilizzare.
Gli scienziati hanno modificato gli anticorpi aggiungendo una targhetta molecolare. Quando l’anticorpo ingegnerizzato si lega alla proteina patogena, la targhetta attiva immediatamente i recettori dell’autofagia. La cellula riconosce l’agglomerato come materiale da eliminare, lo trasporta nell’impianto di smaltimento interno e lo demolisce completamente.
Risultati preclinici e miglioramento dei sintomi nei modelli animali
I test condotti in laboratorio su modelli cellulari e murini hanno fornito riscontri positivi. L’azione combinata del trasporto tramite vescicole extracellulari e del sistema di eliminazione basato sull’autofagia ha permesso una pulizia approfondita delle cellule nervose.
Nei modelli animali affetti da patologie analoghe all’Alzheimer, alla SLA e alla demenza, la riduzione dei depositi tossici ha prodotto un netto miglioramento dei sintomi motori e cognitivi. I topi trattati con questa combinazione terapeutica hanno mostrato una maggiore fluidità nei movimenti, una memoria più efficiente e una sopravvivenza dei neuroni nettamente superiore rispetto ai gruppi di controllo.
L’industria biotecnologica e le grandi aziende farmaceutiche hanno già investito ingenti risorse nello sviluppo di trattamenti immunologici per la neurodegenerazione. Molte delle molecole sperimentate in passato hanno mostrato una scarsa efficacia durante gli studi clinici proprio a causa della difficoltà nel raggiungere il cervello e nell’eliminare i bersagli proteici. La strategia ideata all’Università di Ottawa potrebbe rappresentare la chiave di volta per rendere finalmente efficaci farmaci già esistenti.
Sequenza operativa del processo terapeutico integrato
L’intero percorso di somministrazione e pulizia molecolare si articola in passaggi sequenziali e coordinati:
-
Ingegnerizzazione dell’anticorpo: Gli anticorpi vengono modificati sinteticamente tramite l’aggiunta di una targhetta molecolare specifica, studiata per interagire con i recettori dell’autofagia cellulare.
-
Incapsulamento nelle vescicole: Gli anticorpi ingegnerizzati vengono inseriti all’interno di vescicole extracellulari purificate, che fungono da involucro protettivo e veicolo di trasporto.
-
Attraversamento emato-encefalico: Le vescicole extracellulari vengono somministrate nel circolo sanguigno, attraversano la barriera emato-encefalica mediante transcitosi ed entrano nel tessuto cerebrale.
-
Riconoscimento del bersaglio: Una volta all’interno del cervello, le vescicole rilasciano gli anticorpi, che individuano gli aggregati proteici patologici e vi si legano saldamente.
-
Reclutamento del macchinario di autofagia: La targhetta molecolare presente sull’anticorpo richiama le proteine dell’autofagia cellulare, promuovendo la formazione dell’autofagosoma attorno al complesso tossico.
-
Degradazione e riciclaggio: L’autofagosoma si fonde con il lisosoma, un organello ricco di enzimi digestivi, demolendo gli aggregati tossici e riducendoli in aminoacidi innocui riutilizzabili dalla cellula.
Approfondimenti tecnici e meccanismi molecolari della ricerca
Dinamica di permeabilità della barriera emato-encefalica e transcitosi vescicolare
La barriera emato-encefalica (BEE) è costituita da una rete complessa di cellule endoteliali microvascolari cerebrali, sorrette dalle giunzioni serrate, dai periciti e dai prolungamenti astrocitari (piedini astrocitari). La presenza di proteine di giunzione come le claudine (in particolare claudina-5), l’occludina e le molecole di adesione giunzionale (JAM) crea una resistenza elettrica transendoteliale estremamente elevata, pari a circa $1500-2000 \ \Omega \cdot \text{cm}^2$, limitando fortemente il passaggio paracellulare di molecole idrofile e macromolecole con peso molecolare superiore a $400-500 \ \text{Dalton}$.
Gli anticorpi monoclonali IgG convenzionali hanno un peso molecolare di circa $150 \ \text{kDa}$, massa che ne impedisce la diffusione passiva. Il loro ingresso fisiologico è limitato a rari processi di transcitosi mediata da recettori (RMT) attraverso recettori come quello per la trasferrina (TfR) o per l’insulina (IR). Tuttavia, la saturazione di questi recettori e il sequestro nei lisosomi endoteliali limitano la frazione terapeutica al valore di circa $0,01\%$ della dose somministrata.
Le vescicole extracellulari (EV) utilizzate nello studio condotto presso l’Università di Ottawa appartengono principalmente alla classe degli esosomi (diametro compreso tra $30 \ \text{nm}$ e $150 \ \text{nm}$). La membrana lipidica delle EV è arricchita in sfingomielina, colesterolo, fosfatidilserina e tetraspanine (come CD63, CD81 e CD9). Questa composizione lipidica e proteica garantisce una stabilità elevata nel sangue e permette l’interazione con l’endotelio cerebrale attraverso meccanismi di endocitosi mediata da adsortivo-fagocitosi o macropinocitosi, permettendo alle EV di attraversare l’endotelio per transcitosi senza alterare l’integrità strutturale delle giunzioni serrate.
Architettura strutturale dei recettori sintetici dell’autofagia e ingegnerizzazione degli anticorpi
La componente principale dell’innovazione sviluppata da Huishan Guo e Derrick Gibbings risiede nella struttura chimico-biologica dell’anticorpo modificato. Gli anticorpi tradizionali sono strutturati per attivare il sistema del complemento o la citotossicità cellulare dipendente da anticorpi (ADCC) tramite il loro frammento cristallizzabile ($\text{Fc}$). Nel contesto intracellulare del tessuto nervoso, tuttavia, la frazione $\text{Fc}$ non è sufficiente per avviare la bonifica di grandi aggregati proteici privi di membrana.
I ricercatori hanno sviluppato veri e propri recettori sintetici dell’autofagia. L’anticorpo ingegnerizzato è composto da:
-
Una regione di legame al bersaglio (scFv o Fab) progettata per riconoscere con elevata affinità ($K_d$ nell’ordine dei nanomoli) gli epitopi delle forme patogene di Tau iperfosforilata e della proteina TDP-43 (Tar DNA-binding protein 43).
-
Un dominio connettore flessibile costituito da sequenze amminoacidiche ripetute di glicina-serina ($(\text{Gly}_4\text{Ser})_n$), che garantisce la necessaria mobilità spaziale alla molecola.
-
Un sequenza segnale di degradazione autofagica, contenente un motivo di interazione LIR (LC3-Interacting Region). Il motivo LIR rispetta la sequenza amminoacidica canonica $[W/F/Y]-X-X-[L/I/V]$, dove $X$ rappresenta un amminoacido variabile.
Quando l’anticorpo modificato si lega alla proteina patogena, la sequenza LIR esposta recluta direttamente le proteine della famiglia MAP1LC3 (in particolare LC3B) o GABARAP, che sono ancorate alla membrana nascente dell’isolamento autofagico (fagoforo).
Meccanismo biochimico di eliminazione di Tau e TDP-43 tramite via autofagico-lisosomiale
Nelle patologie neurodegenerative quali l’Alzheimer e la demenza frontotemporale, la proteina Tau subisce modificazioni post-traduzionali anomale (iperfosforilazione da parte di chinasi quali GSK-3$\beta$ e CDK5), formando filamenti elicoidali appaiati (PHF). Nella SLA, la proteina TDP-43 va incontro a misfolding, traslocazione dal nucleo al citoplasma, iperfosforilazione e proteolisi, generando frammenti C-terminali citotossici agendo da innesco per l’aggregazione.
La via biochimica attivata dagli anticorpi recettori dell’autofagia si sviluppa attraverso fasi molecolari precise:
-
Nucleazione del fagoforo: La presenza della sequenza LIR sull’anticorpo legato al target accelera il reclutamento del complesso della chinasi PI3K di classe III, formato da Beclin-1, Vps34, Vps15 e Atg14L.
-
Generazione di Fosfatidilinositolo 3-fosfato ($\text{PI3P}$): Il complesso Vps34 produce locali elevati livelli di $\text{PI3P}$, attirando le proteine effettrici WIPI2 sulla membrana del fagoforo.
-
Coniugazione di LC3: Il sistema enzimatico E1-like (Atg7) ed E2-like (Atg3), insieme al complesso E3-like Atg16L1-Atg5-Atg12, catalizza il legame covalente tra la forma solubile LC3-I e il lipide fosfatidiletanolammina (PE), generando LC3-II ancorata alla membrana.
-
Chiusura e maturazione dell’autofagosoma: La catena polimerica proteina-anticorpo-LIR viene completamente avvolta dalla membrana a doppia strato del fagoforo, formando l’autofagosoma maturo.
-
Fusione lisosomiale e degradazione: L’autofagosoma si muove lungo i microtobuli neuronali tramite motori molecolari di dineina verso la regione perinucleare, dove si fonde con il lisosoma sotto la mediazione delle proteine SNARE (VAMP8, Syntaxin-17) e della proteina di membrana Rab7.
-
Idrolisi enzimatica: All’interno dell’autolisosoma, l’ambiente acido (mantenuto a $pH \approx 4,5-5,0$ dalle pompe protoniche $\text{v-ATPase}$) e le idrolasi lisosomiali (quali le catepsine B, D e L) scindono sia l’anticorpo sia gli aggregati di Tau o TDP-43 in singoli amminoacidi, ripristinando l’omeostasi proteica del neurone.
Modellizzazione cinetica ed equazioni della clearance proteica
L’efficacia del sistema integrato di rimozione rispetto alla somministrazione di anticorpi nativi può essere descritta quantitativamente mediante un modello di cinetica chimica a scomparti.
Definendo la concentrazione di aggregati proteici tossici intracellulari come $P$, la velocità di formazione e aggregazione spontanea della proteina patogena come $K_{agg}$, e la costante di degradazione basale lisosomiale o proteasomiale della cellula come $k_{deg}$, la variazione nel tempo della concentrazione degli aggregati $P$ senza trattamento segue la seguente equazione differenziale:
In condizioni patologiche, la costante $K_{agg}$ supera $k_{deg}$, portando ad un accumulo progressivo di proteina patogena ($\frac{dP}{dt} > 0$).
Quando si somministra l’anticorpo nativo $A_{nat}$, l’effetto di neutralizzazione si basa sull’equilibrio di legame espresso dalla costante di dissociazione $K_d$:
Poiché l’anticorpo nativo non incrementa la velocità di degradazione $k_{deg}$, la quantità totale di proteina patogena resta sostanzialmente inalterata, formando complessi $A_{nat}P$ che continuano ad ingombrare il citoplasma.
Nel caso dell’anticorpo dotato di targhetta per l’autofagia $A_{auto}$, somministrato tramite vescicole extracellulari, si introduce una costante di clearance autofagica catalizzata $k_{auto}$, proporzionale alla concentrazione dei complessi trimerici $[LC3 \cdot A_{auto}P]$:
Considerando che l’apporto delle vescicole extracellulari incrementa la concentrazione di anticorpo intra-cerebrale $[A_{auto}]$ di un fattore fino a $100$ volte rispetto alla somministrazione sistemica classica, il termine di sottrazione $k_{auto} \cdot \left( \frac{[A_{auto}] \cdot P}{K_d + P} \right)$ diventa dominante.
Questo porta $\frac{dP}{dt}$ ad assumere valori negativi, garantendo la progressiva ed efficace clearance dei depositi proteici e riportando i livelli di aggregati tossici al di sotto della soglia di neurotossicità.
Le prossime fasi della ricerca condotta dal team di Derrick Gibbings punteranno a ottimizzare i protocolli di produzione su larga scala delle vescicole extracellulari e a condurre studi clinici sull’uomo, al fine di valutare la sicurezza e l’efficacia di questa piattaforma biotecnologica nei pazienti affetti da patologie neurodegenerative.
Traduzione abstract. La disponibilità dello studio completo, in accesso libero o riservato, è verificabile tramite il link del DOI nel box sotto se disponibile.
Abstract
Nelle malattie neurodegenerative come la demenza frontotemporale e la sclerosi laterale amiotrofica, le forme patologiche di proteine come Tau e TDP-43 si accumulano all’interno di grandi inclusioni eterogenee nelle cellule. Le attuali strategie per eliminare tali specie proteiche aberranti nei pazienti incontrano tre sfide principali: attraversare la barriera emato-encefalica e la membrana plasmatica, riconoscere specificamente le forme patologiche delle proteine e attivare meccanismi per eliminare le entità di grandi dimensioni. Qui fondiamo LC3A, una proteina centrale nel reclutamento dei substrati negli autofagosomi, ad anticorpi stabili nel citoplasma. Questi recettori dell’autofagia ingegnerizzati, mirati a Tau o TDP-43, vengono somministrati utilizzando piccole vescicole extracellulari e riducono la patologia in modelli, tra cui Tau P301S neuroni primari di topo adulto , TDP-43 G298S Neuroni motori derivati da iPSC e dopo iniezione endovenosa in topi Tau P301S . Allo stesso modo, la somministrazione mediata da virus adeno-associati in TDP-43 ΔNLS Nei topi, questo metodo migliora la rimozione della proteina TDP-43 patologica. Questa strategia di degradazione mirata consente il rilascio nel cervello, sfruttando al contempo la specificità degli anticorpi e la capacità dell’autofagia di degradare grandi entità intracellulari.
Huishan Guo et al., Engineered autophagy receptors administered with extracellular vesicles eliminate pathological Tau and TDP-43, Nature Biomedical Engineering (2026). DOI: 10.1038/s41551-026-01774-9


 by
