Le cellule possono disattivare i geni impacchettando strettamente il DNA attorno a proteine chiamate istoni. Tuttavia, gli scienziati del St. Jude Children’s Research Hospital hanno scoperto che, in determinate condizioni, questo impacchettamento si comporta più come melassa che come un solido, consentendo a un adattatore chimico appositamente progettato di trasportare proteine che attivano i geni attraverso l’impacchettamento fino al gene silenziato al suo interno. Inoltre, i ricercatori hanno dimostrato che questo processo riattiva il gene della frataxina, che è silenziato in modo anomalo nell’atassia di Friedreich, una malattia neurodegenerativa. Lo studio, pubblicato oggi su Nature Cell Biology , mette in discussione un’ipotesi di lunga data secondo cui le modifiche chimiche degli istoni operano in modo binario, “acceso” o “spento”.
Nota del redattore:
L’atassia di Friedreich è una rara malattia genetica, ereditaria e neurodegenerativa che causa la perdita progressiva della coordinazione dei movimenti, problemi cardiaci e deformità ossee. È causata da un difetto nel gene della fratassina e si manifesta di solito durante l’infanzia o l’adolescenza.
“I ricercatori hanno a lungo segnalato la presenza di istoni con modificazioni ‘anomale’ in corrispondenza di geni attivamente espressi; questi esempi sono stati spesso considerati anomalie o eccezioni alla regola”, ha affermato l’autore corrispondente Aseem Ansari, direttore del Dipartimento di Biologia Chimica e Terapia del St. Jude Children’s Research Hospital. “Noi proponiamo che queste barriere possano essere presenti, ma se la proteina attivante il gene appropriata viene reclutata in quell’ambiente, la cellula le considera più come un ostacolo che come un segnale di stop.”
BRD4 funge da trampolino di lancio per il condensato.
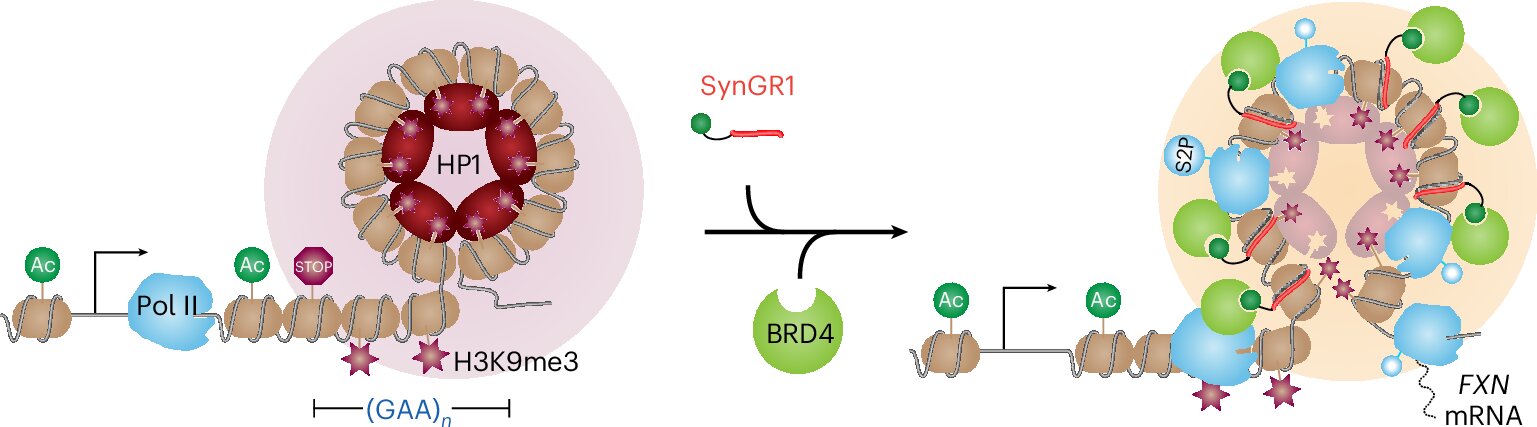
Nell’atassia di Friedreich, il gene della frataxina acquisisce centinaia di copie extra di brevi sequenze di DNA ripetute. Queste sequenze attraggono un meccanismo che apporta modifiche chimiche agli istoni, chiamate metilazioni. Una proteina chiamata HP1 legge queste metilazioni e impacchetta queste sezioni in compartimenti compatti e viscosi chiamati condensati, che silenziano in modo anomalo il gene.
Il team di Ansari ha cercato di interrompere questo processo e liberare il gene della frataxina utilizzando il suo regolatore genico sintetico, SynGR1. Questa molecola si lega alle brevi sequenze ripetute di DNA e recluta la proteina attivante il gene BRD4 nel sito. Tuttavia, hanno scoperto un paradosso: il gene veniva attivato, ma i marcatori di metilazione che segnalavano lo stato repressivo “spento” si stavano rafforzando.
“Con nostra sorpresa, i marcatori di metilazione repressiva e i livelli di HP1 sono effettivamente aumentati anziché diminuire con l’aumentare dei livelli di espressione”, ha affermato Ansari. “Inizialmente questo non aveva senso, ma dopo anni di lavoro di approfondimento, è diventato chiaro che i marcatori non stavano affatto scomparendo.”
I ricercatori hanno scoperto che BRD4 può entrare nell’ambiente repressivo del condensato HP1 e portare con sé i meccanismi di espressione genica, come la RNA polimerasi II. “Abbiamo scoperto che è possibile mantenere i marcatori di metilazione repressivi e ottenere comunque l’espressione genica se ci sono altri fattori che aiutano la polimerasi lungo il percorso”, ha affermato Ansari. “Con il nostro sistema SynGR1, abbiamo fornito quelli che si configurano come dei gradini, punti in cui la polimerasi può spostarsi da una molecola di BRD4 all’altra e continuare a progredire all’interno di questo ambiente altrimenti ostile.”
I risultati suggeriscono che i condensati di HP1 potrebbero essere utilizzati per riattivare geni che sono stati erroneamente disattivati, come nell’atassia di Friedreich, o per sopprimere geni che sono anormalmente attivi, come nella malattia di Huntington. Lo studio invita inoltre alla cautela nel formulare affermazioni funzionali riguardanti le modificazioni degli istoni.
“Attualmente conosciamo forse una ventina di modificazioni degli istoni, o almeno crediamo di conoscerle. Una volta che si inizia a combinarle, il numero di stati possibili diventa enorme e la complessità diventa schiacciante”, ha affermato Ansari. “Anche con mappe dettagliate, rimane difficile prevedere cosa servirà effettivamente per superare la repressione in un determinato sito. Il messaggio principale che vogliamo trarre da questo fenomeno è che il contesto è fondamentale.”
Abstract
Il meccanismo con cui i geni vengono de-inattivati senza la rimozione della cromatina repressiva è un fenomeno ancora poco compreso. Una modalità dominante di repressione avviene tramite la metilazione della lisina 9 dell’istone H3 (H3K9me3), un marcatore che attiva la proteina dell’eterocromatina 1 (HP1) per indurre la compattazione della cromatina e il silenziamento trascrizionale. La rimozione e la sostituzione di questo marcatore repressivo con gruppi acetilici/acilici reclutano fattori positivi come BRD4/BET per stimolare la trascrizione genica. In questo studio, dimostriamo che nell’atassia di Friedreich, un regolatore genico sintetico (SynGR1/SynTEF1) permette la trascrizione attraverso la cromatina repressiva senza la rimozione o la sostituzione di H3K9me3 o HP1. Reclutando BRD4/BET nelle ripetizioni repressive GAA della frataxina ( FXN ), SynGR1 crea uno stato paradossale in cui coesistono la trascrizione genica e la cromatina repressiva. Contrariamente a quanto si pensava, abbiamo scoperto che BRD4 si distribuisce in condensati HP1 a fase separata in vitro e in punti HP1 nelle cellule derivate dai pazienti, offrendo così una spiegazione meccanicistica per la desilenziazione della trascrizione senza la dispersione della cromatina repressiva a livello mesoscopico. Più in generale, il nostro studio evidenzia la natura dinamica della cromatina repressiva e la dipendenza dal contesto dei marcatori epigenetici nella regolazione dell’espressione genica.
Christopher J. Brandon et al, BRD4 recruitment into HP1 condensates desilences transcription without erasure of repressive chromatin, Nature Cell Biology (2026). DOI: 10.1038/s41556-026-02044-1


 by
